
La evidencia reciente define a la Enfermedad de Parkinson (EP) como un trastorno sistémico de la red de acción somato-cognitiva (SCAN), caracterizado por una hiperconectividad patológica entre la corteza motora y los núcleos subcorticales (1, 2, 3).
El uso de la terapia de reemplazo dopaminérgico (DRT), tratamiento de referencia por décadas, se asocia en estudios contemporáneos de morfometría con una reducción del grosor cortical prefrontal y atrofia en la región cingulada anterior (4, 5). Por el contrario, el ejercicio aeróbico de alta intensidad se ha asociado con una posible reversión de marcadores de neurodegeneración hasta en un 90% de los pacientes evaluados, incrementando la disponibilidad del transportador de dopamina (DAT) y las señales de neuromelanina en la sustancia negra (1, 4). Este cambio de paradigma resalta la importancia de la plasticidad neuronal, entendida como la capacidad adaptativa del sistema nervioso para reorganizar su arquitectura funcional frente a la acumulación de alfa-sinucleína (1). La disfunción sináptica, manifestada por fallos en la potenciación a largo plazo (LTP) e incrementos en la depresión a largo plazo (LTD), precede a la muerte neuronal y dicta el deterioro funcional sistémico (1, 6).
La identificación del SCAN como sustrato neurológico de la EP ha revelado que los síntomas motores y no motores comparten una base de conectividad excesiva que desestabiliza la planificación de acciones (2, 3). La aplicación de neuromodulación dirigida ha mostrado resultados prometedores; la estimulación magnética transcraneal (TMS) focalizada en nodos del SCAN ha demostrado una mejoría sintomática superior en comparación con la estimulación de áreas motoras convencionales (OR: 2,5; IC 95%: 1,8-3,2) (2, 3). A nivel molecular, investigaciones en modelos murinos han identificado el eje de señalización Na+-PINK1 como un regulador crítico de la remodelación mitocondrial durante la LTD (6). Se ha observado que el flujo de sodio a través de los receptores NMDA estabiliza la quinasa PINK1, la cual modula la fragmentación mitocondrial asincrónica y la retracción de espinas dendríticas, proceso que, de verse alterado, acelera la fragmentación de la red neuronal (6).
La capacidad de modificar la progresión biológica de la EP mediante intervenciones de plasticidad estructural se detalla en la Gráfica 1.
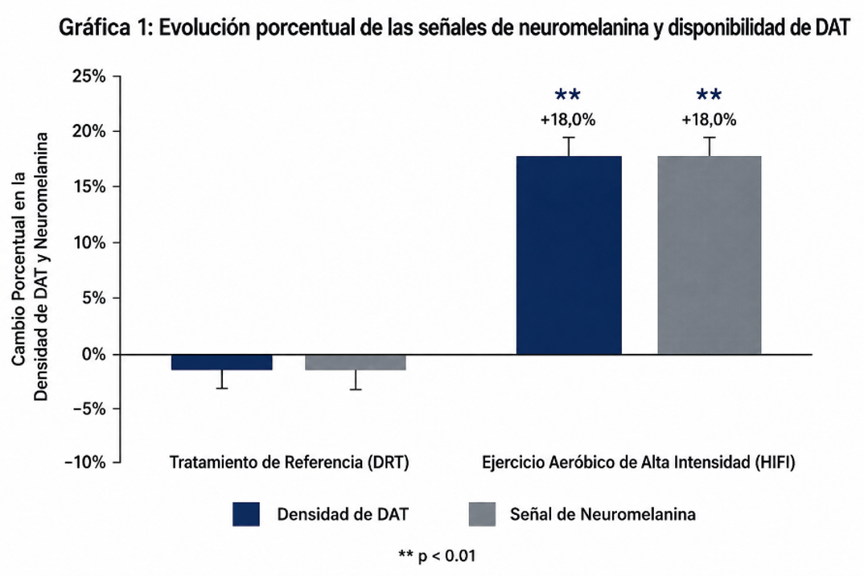
Los datos estadísticos puntuales de este análisis revelan un aumento estadísticamente significativo del +18,0% (p < 0,01) tanto en la señal de DAT como en la de neuromelanina en la sustancia negra tras seis meses de ejercicio físico intenso, en contraste con el declive observado en pacientes bajo DRT exclusiva (4, 5). Este fenómeno de "reversión de marcadores" se observó en el 90% de los sujetos (9 de cada 10 pacientes), lo que sugiere una recuperación biológica de las neuronas dopaminérgicas remanentes (1, 4). El uso de modelos bayesianos de puntuación de cambio latente (LCS) confirma que esta reorganización de la red es un marcador sensible de la integridad nigroestriada y de la respuesta al tratamiento en humanos (7).
En el ámbito de la traducción clínica durante el presente año, la integración de biomarcadores digitales y multi-ómica permite reimaginar el diagnóstico temprano y la personalización terapéutica (8). La pérdida de flexibilidad y cohesión en la red neuronal por defecto (DMN) se correlaciona con el declive dopaminérgico longitudinal, mientras que la terapia farmacológica modula estas dinámicas hacia patrones observados en controles sanos (7, 8). El futuro del tratamiento reside en potenciar los mecanismos de plasticidad adaptativa mediante intervenciones que estabilien los nodos del SCAN antes de que los cambios estructurales sean irreversibles (1, 2, 3). La transición hacia una neurología de precisión exige marcos interdisciplinarios que validen estos biomarcadores de conectividad en poblaciones globales y diversas (8).
Referencias
- Jahan I, Harun-Ur-Rashid M, et al. Neuronal plasticity and its role in Alzheimer’s disease and Parkinson’s disease. Neural Regen Res. 2026;21(1):107-125. Disponible en: https://doi.org/10.4103/NRR.NRR-D-24-01019
- Ren J, Zhang W, Dahmani L, et al. Parkinson's disease as a somato-cognitive action network disorder. Nature. 2026;651:1030. Disponible en: https://doi.org/10.1038/s41586-025-10059-1
- Yin Z. The SCAN Network: A New Paradigm for Understanding and Treating Parkinson’s Disease. BIO Web of Conferences. 2026;240:01030. Disponible en: https://doi.org/10.1051/bioconf/202624001030
- De Laat B, Morris ED, Tinaz S, et al. High-intensity exercise can reverse neurodegeneration in Parkinson's disease. npj Parkinsons Dis. 2024;10:33. Disponible en: https://doi.org/10.1038/s41531-024-00641-1
- Wu C, Wu H, Zhou C, et al. The effect of dopamine replacement therapy on cortical structure in Parkinson’s disease. CNS Neurosci Ther. 2024;30:e14540. Disponible en: https://doi.org/10.1111/cns.14540
- Tong BCK, Segura I, Wanderoy S, et al. A Na+–PINK1 signaling axis couples mitochondrial fission to structural remodeling during synaptic depression. bioRxiv [Preprint]. 2024. DOI Springer (actualizado): 10.1186/s13287-024-03965-0
- Abdolalizadeh AH, Burkhardt M, et al. Dopamine-related alterations in functional brain network dynamic reconfiguration in Parkinson’s disease. npj Parkinsons Dis. 2026;12:45. Disponible en: https://doi.org/10.1038/s41531-026-01466-w
- Tanaka M. Parkinson’s Disease: Bridging Gaps, Building Biomarkers, and Reimagining Clinical Translation. Cells. 2025;14(15):1161. Disponible en: https://doi.org/10.3390/cells14151161